تصور کنترل بافت/ریزمحیط به عنوان نمونه ای از چگونگی تداخل با پاسخ خودگردان سلولی سازنده که یک تعامل بهینه برای القاء را هدف قرار می دهد، دلهره آور بود. آنگونه که در حال حاضر تصور میشود، فارماکولوژی را به چالش میکشد و نیاز به تکرارهای مکانیکی چند ظرفیتی جدید با واژگانی بکر دارد که به ناچار برای بیشتر افراد ناآشنا است.
یافته های مقاومت در ایمنی ذاتی در فصل های جداگانه توضیح داده شده است و هرگز به طور کامل توضیح داده نشده است. پنجره پاسخ خودکار سلولی برای درمان پیشرفته اولین تلاشی است برای ارتباط بین چنین دانشی و توضیح نحوه عملکرد آنها در مجموع مدتها قبل از اینکه پاسخ مولفه های التهابی دیررس مقاومت (ایمنی تطبیقی) را فراخوانی کند. چنین دیدگاهی مبتنی بر علم پایه محکم و شواهد بالینی قوی است، اما برخی از جنبههای ساختار مکانیکی سازنده فاقد اعتبار در مطالعات سلولی و مولکولی هستند. با توسعه بیشتر، روشن شدن در چنین سطحی امیدوار است با جنبه مولکولی تئوریشده سازگار باشد.
شواهدی که به شدت انگیزه نگارش مقاله در مورد ساختار ایمنی ذاتی بود شامل نتیجه احیا کننده-درمانی ایدهآل بود که در تحقیقات اولیه مشاهده شد و به کلینیک ترجمه شد، و محافظت فوقالعاده در برابر عفونت که در بافتهای آسیبدیده دیده میشود، هم کاملاً آشکار و هم بیسابقه. اولین خط شواهد در مقاله به تفصیل آمده است. اما شواهد جدیدی برای محافظت ضد میکروبی از ایمنی ذاتی، که در این مقاله گنجانده نشده است، ذکر شده و به طور خلاصه در زیر مورد بحث قرار گرفته است، و اعتبار قوی را به یافته های گسترده مبارزه با بافت آسیب دیده و عاری از عفونت اضافه می کند.
برای چندین دهه، عملکرد اولیه پپتیدهای مشتق شده از تخریب پروتئازوم به عنوان ارائه آنتی ژن کلاس I پیچیده سازگاری بافتی برای شروع ایمنی تطبیقی سلول T تصور می شد. اما تحقیقات در دهه اخیر روشن کرده است که این عملکرد به تولید پپتیدهای ضد میکروبی با خواص کاتیونی در مقیاس و تنوع غیرقابل تصور، از طریق تخریب بیشتر پروتئوزومی تریپتیک ناشی از تغییرات در ترکیب و عملکرد پروتئومی و القای عوامل بیماریزا برای استخراج نهایی این بخشهای کاتیونی، که باعث توقف رشد باکتریهای کاتیونی میشود، گسترش مییابد. بدون دخالت تطبیقی و همچنان در خط اول دفاعی (2) .
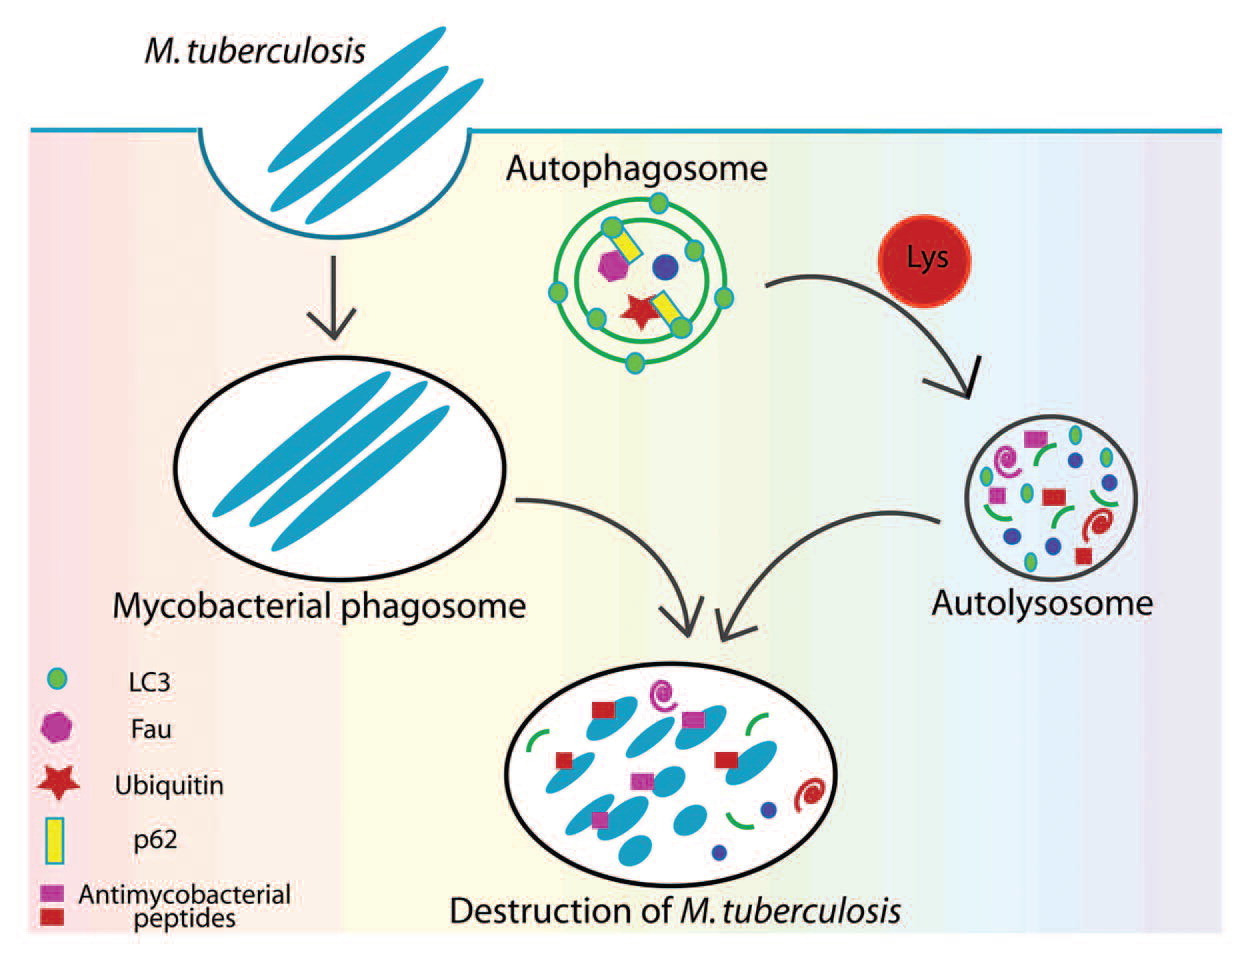
در سال 2011، Ponpuak و Deretic (3) توضیح دادند که در اتوفاژی، فاگوزوم ها بیش از یک واکوئل برای M. tuberculosis هستند. مولکول آداپتور p62 یا sequestosome 1، با سوبستراهای فاگوزومی تعامل می کند و اجزای سیتوزولی بی ضرر (پروتئین ریبوزومی rpS30، پیش ساز FAU و یوبیکوئیتین) را برای تخریب، آزاد می کند و پپتیدهای ضد میکروبی را از مواد استفاده شده یا دور ریخته شده آزاد می کند. این به فاگوزوم ویژگی های لیزوزومی و بلوغ می دهد که همراه با جذب هیدرولازها و متحرک سازی میانی سوبستراها و اسیدی شدن آنها، در نهایت منجر به ادغام آن به یک اتولیزوزوم واقعی می شود. این فرض که نتیجه این تبدیل صرفاً فراهم کردن اسیدهای آمینه رایگان برای بازیافت در دورههای گرسنگی است، به چالش کشیده شده است. از آن زمان مشخص شده است که پروتئولیز این پروتئین های سیتوزولی منجر به مخلوطی از پپتیدهای رمزی با قدرت ضد میکروبی می شود که آنتی بیوتیک های طبیعی جدیدی به نام “کریپتیدها” را می سازند که از مواد بیولوژیکی دور ریخته شده تولید می شوند. یا از طریق تشکیلات زنجیره ای خاص از پروتئین های سطح باکتری دارای برچسب یوبیکوئیتین هستند که می توانند از غشاء جدا شوند و به پروتئازوم ها تحویل داده شوند و به شدت یکپارچگی دیواره سلولی باکتری را به خطر بیندازند و محتویات بیماری زا را به داخل سیتوزول بریزند (5). به طور خلاصه، تبدیل و بازیافت، عملکرد ارزشمند پس از خود را بهبود می بخشد، مانند از بین بردن مایکوباکتری ها، که به دلیل مقاومت زیاد آنها در برابر دفع شناخته شده است. شکل را ببینید 1.
شکل 1
حذف M. tuberculosis با اتوفاژی و p62. مایکوباکتریوم توسط ماکروفاژها فاگوسیتوز می شود و حداقل برای مدتی در فاگوزوم باقی می ماند. هنگامی که اتوفاژی القا می شود، p62، به عنوان یک عامل دو عملکردی، با سوبستراهای اتوفاژیک و LC3 تعامل می کند و سوبستراهای سیتوزولی اضافی را از بین می برد. بلوغ اتوفاگوزوم و جذب هیدرولاز باعث تخریب همه سوبستراها و تبدیل آنها به پپتیدها (کریپتیدها) با فعالیت ضد میکروبی می شود. برگرفته از (3)
شکل 2
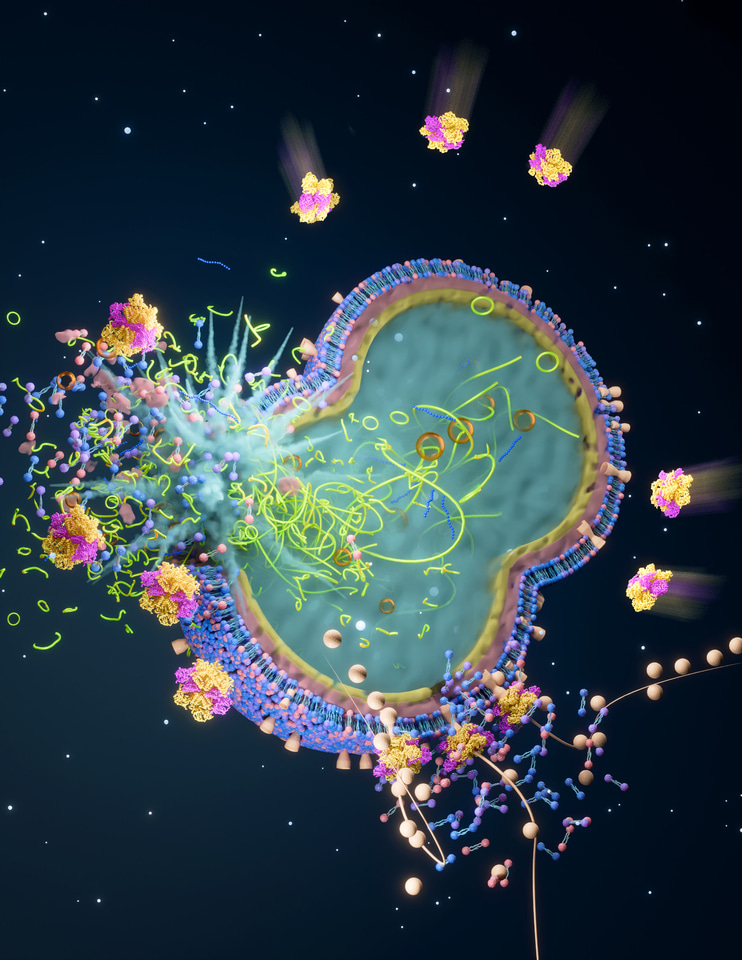 کندن باکتری برگرفته از (5)
در مارس 2025، گلدبرگ و همکاران. (2) توضیح داد که تولید کریپتیدها با خواص کاتیونی نیز در یک عملکرد پروتئازوم رخ می دهد که برای دهه ها تصور می شد به تولید کمپلکس سازگاری بافتی I یا تخریب پروتئین های بازدارنده (IκBs) برای فعال کردن فاکتور هسته ای کاپا B (NF-κB) یا فعال کردن پیش سازهای پروتئینی مانند عملکردهای تنظیم کننده Sp3، S2، محدود می شود. Mga2p و Epe1. با این حال، آنها همچنین نشان دادند که منبع استخراج در بسترهای بازیابی شده از سیتوزول است، مانند اتوفاژی. علاوه بر این که یک مرحله تکاملی درجه اول است، پپتیدهای ضد باکتری در طیف گستردهای از بافتها و سلولها یافت میشوند و فعالیت طیف گستردهای را علیه باکتریها، قارچها، ویروسها و برخی انگلها اعمال میکنند. آنها علاوه بر عملکرد کاتیونی خود، فعالیت رونویسی و ترجمه را در میزبان تعدیل می کنند. این پپتیدها توسط گلدبرگ و همکاران، پپتیدهای مشتق از پروتئازوم (PSEI PDDPs) نامیده شدند. آنها به طور سازنده تولید می شوند، اما تولید آنها نیز می تواند در پاسخ به عفونت القا شود. یک واحد تنظیم کننده پروتئازوم، PSME3، تخریب تریپتیک را ترویج می کند و پپتیدها را با پایانه های کاتیونی افزایش می دهد. تجزیه و تحلیل محاسباتی این پدیده نشان می دهد که بیشتر پروتئین های پروتئازوم مستعد این تخریب هستند و بنابراین پتانسیل پروتئازوم برای تولید PDDP بسیار قدرتمند است. ان در سیلیکو شناسایی با استفاده از الگوریتم Pepsickle (4) از مکانهای برش بالقوه برای تولید اسیدهای آمینه بین 10 تا 50 واحد در طول، که با حداقل محدوده قدرت بر اساس مقایسه ساختاری با پپتیدهایی با فعالیت ضد باکتری اثبات شده تخمین زده میشود، 270872 پپتید فرضی با اصطلاح کربوکسیل کاتیونی را شناسایی کرد. به عبارت دیگر، 92 درصد از ژن های مشروح حاوی حداقل یک پپتید با پایانه کاتیونی هستند. این پتانسیل عظیم القای ایمنی سلولی خودگردان برای درمان آسیب های بافتی، بدون خطر عفونت و با احتمال زیاد تولید یک عامل ضد میکروبی شخصی برای مبارزه با پاتوژن های دخیل در هر مورد خاص را نشان می دهد. یکی دیگر از عملکردهای متقاطع که باید به زنجیره ایمنی اضافه شود، شکل 1 مقاله که به عنوان پوستر در این نشریه نشان داده شده است، مفهوم ویژگی ایمنی اولیه و دقیق را از طریق گزاره های متعدد معرفی می کند. روی هم رفته، تفکر جدیدی برای بهبود مقاومت در برابر عفونت و ایمنی، که به عنوان یک پیوستار در نظر گرفته می شود، مورد نیاز است تا در نهایت بر آنها غلبه کنیم.
شناسایی مکانیسم عمل Cubrisoft (مداخله پیشنهاد شده در مقاله) در چارچوب ایمنی سلولی مستقل و عدم وجود عفونت منظم در ضایعات درمان شده با این محصول با مطالعه توصیف شده توسط گلدبرگ و همکاران مطابقت دارد. حفاظت از منابع زیربنای مقاومت اولیه است، که از ضایعات پروتئین سیتوزولی و هزینه های کم انرژی سود می برد، برخلاف یک واکنش دفاعی تطبیقی دیرهنگام بی پروا (1). این شواهد Cubrisoft را در خط مقدم مبارزه با عفونت در بافتهای آسیبدیده بدون اثرات سمی یا نامطلوب قرار میدهد و شرایط بهینه را برای ترمیم احیاکننده شرح دادهشده در “پنجره پاسخ خودکار سلولی برای بهبود پیشرفته” (1) ایجاد میکند.
مراجع
1. فئولی -Tufi E، Redondo GM، Flores JS، Jara DP. پنجره پاسخ خودکار سلولی برای شفای پیشرفته. Discov Med [Internet]. 10 اکتبر 2025 [cited November 9, 2025]؛ 2 (1): 1-42. موجود از: https://link.springer.com/article/10.1007/s44337-025-00478-4
2. گلدبرگ ک، لوبوف A، آنتونلو پی، شمولی MD، یاکر I، ویزمن تی، و همکاران. ایمنی ذاتی سلولی از طریق پپتیدهای دفاعی مشتق از پروتئازوم. طبیعت [Internet]. مارس 2025 [cited 2025 Nov 9];639(8056):1032-41. موجود در: https://www.nature.com/articles/s41586-025-08615-w
3. Ponpuak M، Deretic V. Autophagy و p62/sequestosome 1 پپتیدهای نئو ضد میکروبی (کریپتیدها) را از پروتئین های سیتوزولی تولید می کنند. اتوفاژی [Internet]. 1 مارس 2011 [cited November 9, 2025]؛ 7 (3): 336-7. موجود از: https://doi.org/10.4161/auto.7.3.14500
4. Weeder BR، Wood MA، Li E، Nellore A، Thompson RF. Pepsickle به سرعت و با دقت مکان های برش پروتئازوم را برای شناسایی بهبود یافته نئوآنتی ژن پیش بینی می کند. بیوانفورماتیک [Internet]. سپتامبر 2021؛ 37 (21): 3723-33. موجود در: https://doi.org/10.1093/bioinformatics/btab628
5. قوش سوراو، روی سواپریا، باید نوین. میزبان AAA-ATPase VCP/p97 باکتری های داخل سلولی یوبی کوئیتین شده را به عنوان یک دفاع ضد میکروبی ذاتی لیز می کند. میکروبیولوژی طبیعی 2025; 10(5):1099–1114 موجود در: https://www.nature.com/articles/s41564-025-01984-y?utm_campaign=related_content&utm_source=HEALTH&utm_medium=communities