غربالگری محاسباتی و تجربی مشتقات 6-کلرو-2-هیدروکسی-1-نفتالدئید را به عنوان مختل کننده برهمکنش پروتئین-پروتئین HEG1-KRIT1 شناسایی می کند.

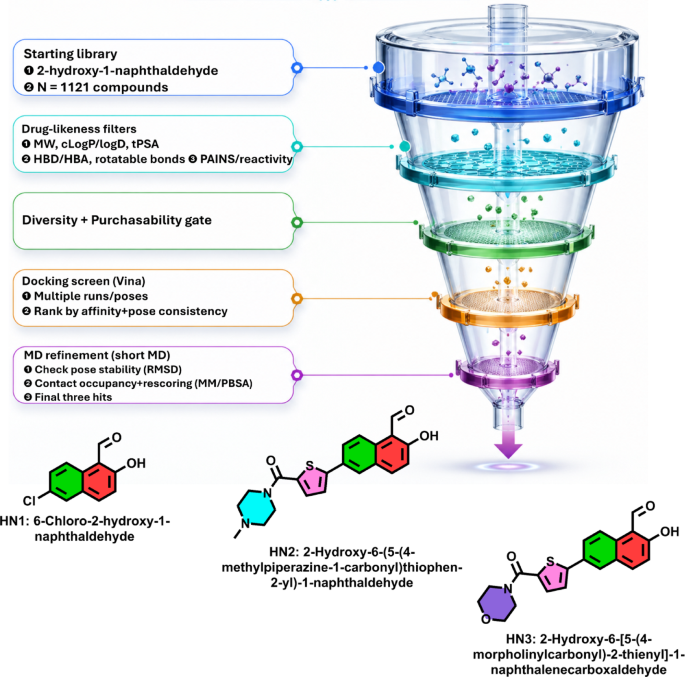
یک قیف غربالگری مجازی گام به گام سه نامزد 2-هیدروکسی-1-نفتالدئید را به عنوان مختل کننده های احتمالی HEG1-KRIT1 در اولویت قرار داد.
گردش کار غربالگری مجازی خلاصه شده در شکل 2، با یک کتابخانه متمرکز از 1121 ترکیب حاوی داربست 2-هیدروکسی-1-نفتالدئید آغاز شد و یک فرآیند انتخاب متوالی و چند معیاره را برای اولویت بندی نامزدها برای ارزیابی محاسباتی و تجربی اعمال کرد. پیشرفت نامزدها بر اساس ویژگیهای ترکیبی فیزیکوشیمیایی، ساختاری، محاسباتی و عملی هر ترکیب بود، بهجای یک برش واحد در امتیاز اتصال. در مرحله اول، ترکیبات از نظر وزن مولکولی، logP/logD محاسبهشده، سطح سطح قطبی توپولوژیکی، تعداد اهداکنندگان و پذیرندههای پیوند هیدروژنی و تعداد پیوندهای قابل چرخش مورد ارزیابی قرار گرفتند. ترکیباتی با نمایههای شباهت دارویی به وضوح نامطلوب، هشدارهای PAIN یا ویژگیهای بالقوه واکنشپذیر اضافی از اولویت حذف شدند. گروه 2-هیدروکسی-1-نفتالدئید عمداً حفظ شد زیرا نشان دهنده داربست شناسایی کووالانسی برگشت پذیر است که به KRIT1 Lys720 متصل است. بنابراین، فیلتر واکنشپذیری برای حذف گروههای واکنشی غیراختصاصی به جای خود عملکرد آلدئیدی پیشبینیشده استفاده شد.
سپس ترکیبات باقی مانده از نظر در دسترس بودن تجاری، حساسیت شیمیایی و تنوع ساختاری مورد ارزیابی قرار گرفتند. در دسترس بودن تجاری برای اجازه دادن به ارزیابی تجربی بدون سنتز بیشتر مورد نیاز بود، در حالی که ارزیابی تنوع ساختاری برای اجتناب از انتخاب چندین آنالوگ تقریباً یکسان استفاده شد. اولویت به ترکیباتی داده شد که الگوهای جایگزینی متفاوتی را در اطراف هسته مشترک 2-هیدروکسی-1-نفتالدئید ارائه می کنند. نامزدهای قابل خرید متعاقباً با استفاده از AutoDock Vina به جیب تشخیص HEG1/HKi2 دامنه KRIT1 FERM متصل شدند. چندین بار اتصال و پوزیشن برای هر ترکیب مورد ارزیابی قرار گرفت. رتبه بندی نامزدها امتیاز اتصال پیش بینی شده، تکرارپذیری جهت گیری لیگاند در سری داکینگ، قرارگیری هسته نفتالدئیدی مشترک در جیب هدف، تماس با باقیمانده های اطراف ناحیه شناسایی HEG1 و عدم برخورد شدید فضایی را در نظر گرفت. نتایج Docking به عنوان پارامترهای رتبهبندی مقایسهای در نظر گرفته میشوند و نه بهعنوان قرابتهای اتصال تجربی. محاسبات مجتمعهای پیشواکنش غیرکووالانسی را مدلسازی کردند و هیچ پیوند کووالانسی به Lys720 اعمال نشد.
کاندیداهای اتصال با بالاترین اولویت تحت اصلاح دینامیک مولکولی کوتاهی قرار گرفتند. زمانی که کاندیداها در جیب KRIT1 موضعی ماندند، تثبیت لیگاند RMSD را پس از آرامش ساختاری اولیه نشان دادند و تماس با ناحیه قابل تشخیص HEG1/HKi2 را حفظ کردند، مورد علاقه قرار گرفتند. نمرات MM/PBSA تنها بهعنوان یک توصیفکننده رتبهبندی کیفی اضافی مورد استفاده قرار گرفت، زیرا محاسبات انرژی آزاد نقطه پایانی در معرض عدم قطعیتهای مرتبط با نمونهبرداری ساختاری، درمان حلپذیری و حذف مشارکتهای آنتروپیک هستند. بنابراین انتخاب نامزد منعکس کننده سازگاری کلی معیارهای فیزیکوشیمیایی، اتصال، پایداری مسیر، پایداری تماس، تنوع شیمیایی و معیارهای در دسترس بودن تجاری است.
این ارزیابی یکپارچه سه نامزد نهایی را تولید کرد: HN1، 6-chloro-2-hydroxy-1-naphthaldehyde. HN2، 2-hydroxy-6-[5-(4-methylpiperazine-1-carbonyl)thiophen-2-yl]-1-نفتالدئید؛ و HN3، 2-hydroxy-6-[5-(4-morpholinylcarbonyl)-2-thienyl]-1- نفتالدئید. HN1 نشان دهنده یک آنالوگ جانشین هالوژن فشرده است، در حالی که HN2 و HN3 آنالوگ های جایگزین شده با C6 را نشان می دهند که به ترتیب حاوی گروه های مشتق شده از پیپرازین و مورفولین هستند. هر سه ترکیب به صورت تجاری در دسترس هستند و قبل از آزمایش تجربی انتخاب شدند. مقادیر IC50 بعدی آنها به صورت گذشته نگر در طول اولویت بندی استفاده نشد. بر این اساس، گردش کار یک منطق شفاف برای پیشبرد سه آنالوگ متمایز شیمیایی به شبیهسازیهای دینامیک مولکولی طولانیمدت و تست رقابت بیوشیمیایی HEG1-KRIT1 ارائه کرد.
گردش کار غربالگری مجازی برای شناسایی مختل کننده های نامزد HEG1-KRIT1 استفاده می شود.
تجزیه و تحلیل اتصال از اتصال HN1-HN3 در جیب تشخیص HEG1 KRIT1 پشتیبانی می کند
تجزیه و تحلیل اتصال نشان داده شده در شکل 3 و 4 نشان می دهد که سه مشتقات اولویت دار 2-هیدروکسی-1-نفتالدئید، منطقه قابل تشخیص HEG1/HKi2 در دامنه KRIT1 FERM را اشغال می کنند، و از انتخاب آنها به عنوان مختل کننده های نامزد HEG1-KRIT1 حمایت می کنند. در شکل 3، موقعیت های لنگر انداخته شده HN1، HN2، و HN3 در همان جیب قابل دسترسی سطحی مورد استفاده توسط بازدارنده مرجع HKi2 قرار دارند، که نشان می دهد این ترکیبات ممکن است با رقابت فضایی یا انرژی برای رابط KRIT1 در تعامل با HEG1 تداخل داشته باشند. HN1 جهت گیری فشرده را در داخل جیب، مطابق با داربست کوچکتر خود اتخاذ می کند، در حالی که HN2 و HN3 از طریق جانشین های متصل به تیوفن خود، عمیق تر در سراسر شیار اتصال گسترش می یابند و امکان تماس گسترده تر با سطح KRIT1 را فراهم می کنند. نقشه های تعامل دوبعدی شکل. 4 بیشتر نشان می دهد که هر سه نامزد با باقی مانده های واقع در نزدیکی محل اتصال HEG1، از جمله برهمکنش های مکرر با باقیمانده هایی مانند Gln473، Lys475، Val512، Ala638، Phe640، Leu717، و Leu721 تماس دارند. این باقیماندهها با محیط تعامل مشاهدهشده برای HKi2 همپوشانی دارند یا نزدیک به آن قرار دارند و از این ایده حمایت میکنند که ترکیبات انتخابشده یک رابط KRIT1 مناسب را هدف قرار میدهند تا یک جیب غیر اختصاصی از راه دور. به نظر می رسد HN1 در عین حال که حالت اتصال نسبتاً ساده ای را حفظ می کند، تماس های اولیه مرتبط با نفتالدئید را حفظ می کند، در حالی که HN2 و HN3 شبکه های برهمکنش آبگریز و قطبی گسترده ای را نشان می دهند که شامل باقی مانده های اضافی مانند His478، His483، Ile490 وLeu494. این الگوی تعامل گستردهتر ممکن است اشغال و وضعیت پایداری جیب را، بهویژه برای HN2 و HN3، بهبود بخشد. به طور کلی، نتایج اتصال نشان میدهد که HN1-HN3 میتواند سطح شناسایی KRIT1 HEG1 را در حالتهای سازگار با اختلال رقابتی تعامل HEG1-KRIT1 درگیر کند، با آنالوگهای HN2 و HN3 گستردهتر پوشش گستردهتری از رابط را برای ارزیابی پایداری بعدی مبتنی بر MD ارائه میدهد.

موقعیت های اتصال پیش بینی شده HN1-HN3 در جیب تشخیص HEG1 KRIT1. مدلهای اتصال سهبعدی که موقعیتهای اتصال بازدارنده مرجع HKi2 و نامزدهای انتخابی ۲-هیدروکسی-۱-نفتالدئید HN1، HN2 و HN3 را در ناحیه اتصال HEG1 دامنه KRIT1 FERM نشان میدهند. هر پانل مجتمع پروتئین لیگاند را هم در تصاویر کارتونی و هم در تصاویر سطحی نشان میدهد تا محل لیگاند را در جیب میانی KRIT1 نشان دهد. ترکیبات در نمایش توپ و چوب نشان داده شدهاند، که اشغال پیشبینیشده آنها از محل تشخیص HEG1/HKi2 و پتانسیل آنها برای تداخل با اتصال HEG1-KRIT1 را برجسته میکند.

پروفایلهای تعامل دو بعدی و نماهای اتصال سطحی HKi2 و HN1-HN3 به KRIT1 متصل شدهاند. اتصال نقشههای تعامل و نمایشهای سطح مربوطه نشاندهنده تماسهای پیشبینیشده تشکیلشده توسط HKi2 و ترکیبات کاندید HN1، HN2 و HN3 در منطقه قابل تشخیص KRIT1 HEG1. نمودارهای دوبعدی برهمکنشهای کلیدی لیگاند-باقیمانده، از جمله پیوندهای هیدروژنی، آبگریز و سایر تماسهای غیرکووالانسی با باقیماندههای اطراف پاکت اتصال را خلاصه میکنند. نماهای سطحی موقعیت هر لیگاند را در جیب KRIT1 نشان می دهد، که از اتصال پیش بینی شده HN1-HN3 در یا نزدیک رابط HEG1-KRIT1 پشتیبانی می کند.
تجزیه و تحلیل انرژی PPI MM/PBSA HN1 را به عنوان تنها کاندید با اثر کاهشدهنده پیشبینیشده روی رابط HEG1-KRIT1 شناسایی کرد.
تجزیه و تحلیل تجزیه MM/PBSA در جدول 1 برای ارزیابی اینکه چگونه اتصال لیگاند بر پایداری انرژی رابط HEG1-KRIT1 در طول 200 ns آخر از 1000 ns شبیه سازی MD تأثیر می گذارد، استفاده شد. کمپلکس apo HEG1-KRIT1 انرژی آزاد متوسط محاسبهشده را نشان داد - 59.86 ± 9.49 kcal/mol و به عنوان حالت مرجع برای ΔΔG استفاده شد.PPI محاسبات HKi2 انرژی PPI تقریباً بدون تغییر نسبت به apo، با ΔG تولید می کندPPI = − 60.19 ± 7.06 kcal/mol و ΔΔGPPI = - 0.33 کیلو کالری در مول، نشان می دهد که رابط HEG1-KRIT1 را در این معیار انرژی ضعیف نکرده است. در میان سه نامزد HN، HN1 تنها ترکیب مرتبط با ΔΔG مثبت بودPPI مقدار، انتقال انرژی سطح به - 57.20 ± 9.45 kcal/mol و دادن ΔΔGPPI = + 2.66 کیلوکالری در مول، مطابق با تضعیف پیش بینی شده اندک تعامل HEG1-KRIT1. در مقابل، HN2 و HN3 ΔG منفی تری دادندPPI مقادیر از کمپلکس apo، با ΔΔGPPI مقادیر - 17.00 و - 7.91 کیلو کالری در مول، به ترتیب، نشان دهنده تثبیت نسبی به جای اختلال در رابط پروتئین-پروتئین است. با این حال، محاسبات HN2 و HN3 با شرایط الکترواستاتیک و حلالپذیری متضاد بسیار بزرگ، و همچنین انحراف استاندارد بالا در انرژیهای PPI کل مشخص میشوند، که نشاندهنده جبران انرژی قابل توجه و عدم قطعیت بیشتر در این تخمینها است. بنابراین، در حالی که اتصال نشان میدهد که HN1-HN3 ممکن است منطقه قابل تشخیص KRIT1 HEG1 را اشغال کند، تجزیه و تحلیل اختلال PPI MM/PBSA از HN1 به عنوان امیدوارکنندهترین نامزد برای تضعیف برهمکنش HEG1-KRIT1 با واسطه لیگاند پشتیبانی میکند، در حالی که HN2 و HN2 و HN2 با KRIT قابل پیشبینیتر به نظر میرسند. بی ثباتی
HN1-HN3 رابط اصلی HEG1-KRIT1 را با وجود حفظ یک ارتباط پیچیده کلی مختل می کند.
معیارهای ناپیوستگی PPI در شکل. در شبیهسازی apo، مجموع فاصله مرکز جرم HEG1-KRIT1 در 0.097 ±3.631 نانومتر ثابت میماند، در حالی که فاصله رابط COM بومی در 0.048 ± 0.627 نانومتر حفظ میشود، مطابق با آرایش سطح فشرده و پایدار. HKi2 یک فاصله رابط بومی مشابه 0.045 ± 0.627 نانومتر و یک نمایه تماس قابل مقایسه با سیستم apo را ایجاد کرد، که نشان میدهد تحت این شرایط شبیهسازی HKi2 به شدت رابط بومی را تقسیم نمیکند. در مقابل، هر سه ترکیب HN فاصله COM رابط طبیعی را افزایش دادند و HN1، HN2 و HN3 به ترتیب به 0.042 ± 0.748، 0.060 ± 0.763 و 0.043 ± 0.694 نانومتر رسیدند. این تغییر از باز شدن یا بازآرایی جزئی ناحیه تماس بومی HEG1-KRIT1 پشتیبانی میکند، با HN2 که بزرگترین جداسازی را ایجاد میکند و HN1 تمایل بیثباتکننده مشابهی را نشان میدهد. اگرچه فاصله کلی HEG1-KRIT1 COM برای سیستم های متصل به HN نسبت به apo کمتر است، افزایش فاصله رابط بومی نشان می دهد که ترکیبات به سادگی دو پروتئین را در سطح جهانی جدا نمی کنند، بلکه در عوض بازسازی محلی سطح تماس بومی را ترویج می کنند.
معیارهای دیگر مبتنی بر تماس از این تفسیر پشتیبانی می کنند. در مقایسه با کمپلکس apo، سیستمهای متصل به HN کاهش بخشهای تماس بومی رابط و افزایش افت تماس بومی را نشان میدهند، با افزایش افت تماس از 0.131 ± 0.131 در apo به 0.086 ± 0.086، 0.222 ± 0.090، 0.222 ± 0.090، و به ترتیب HN1، HN2 و HN3. پیوند هیدروژنی سطحی نیز به طور قابل توجهی نسبت به aro کاهش یافت و از 0.619 ± 1.893 پیوند هیدروژنی در مجتمع بدون لیگاند به 0.364 ± 0.692 برای HN1، 0.561 0.586 برای HN1 کاهش یافت. 0.557 ± 0.649 برای HN3، نشان دهنده تضعیف برهمکنش های قطبی خاص است که به تثبیت رابط بومی کمک می کند. HEG1–KRIT1. در همان زمان، ترکیبات HN تماس های لیگاند-پروتئین قابل توجهی را حفظ می کنند، به ویژه HN1 و HN2، به ترتیب با 94.247 ± 16.089 و 102.016 ± 31.331 تماس در عرض 0.45 نانومتر. این نشان می دهد که لیگاندها با KRIT1 درگیر باقی ماندند در حالی که رابط بومی تا حدی دوباره سازماندهی شد.
تجزیه و تحلیل SASA/BSA در جدول S1 این تفسیر را با نشان دادن اینکه سیستم های متصل به HN به سادگی دو زنجیره را از هم جدا نمی کنند، بلکه یک سطح تماس زنجیره به زنجیره بزرگتر و بازسازی شده را تشکیل می دهند، بیشتر اصلاح می کند. سیستمهای apo و HKi2 به ترتیب مقادیر کم BSA A-Chain B را به ترتیب 3.225 ± 0.393 و 3.227 ± 0.358 نانومتر مربع نشان دادند، در حالی که HN1، HN2 و HN3 کل BSA را به 20.38 9±20.38 9 افزایش دادند. به ترتیب 20.344 ± 2.821 و 20.344 ± 2.821 نانومتر مربع. 20.428 ± 2.220 نانومتر مربع. BSA مربوطه در هر شریک از تقریباً 1.61 نانومتر مربع در سیستمهای apo/HKi2 به تقریباً 10.17-10.21 نانومتر مربع در مجتمعهای محدود به HN افزایش یافت. این افزایش در سطح مدفون، همراه با از دست دادن تماسهای بومی در سطح مشترک، نشان میدهد که HN1-HN3 به جای تفکیک کامل HEG1-KRIT1 باعث افزایش بستهبندی سطحی غیربومی یا گسترده میشود. بنابراین، معیارهای ترکیبی فاصله، تماس بومی، پیوند هیدروژنی، SASA و BSA از مدلی پشتیبانی میکنند که در آن HN1-HN3 به طور کامل مجموعه HEG1-KRIT1 را جدا نمیکند، اما در عوض رابط اتصال بومی را بازسازی میکند. این بازسازی با افزایش جدایی رابط بومی، کاهش حفظ تماسهای بومی، از دست دادن پیوند هیدروژنی سطحی، و گسترش سطح مدفون مشخص میشود، که نشاندهنده تغییر هندسه تماس اولیه HEG1-KRIT1 به یک ارتباط پروتئین-پروتئین غیرطبیعی و تغییر یافته است.

معیارهای زنجیره به زنجیره HEG1-KRIT1 وابسته به زمان و معیارهای فاصله خود واسط در طول شبیه سازی MD 1000 ns. تجزیه و تحلیل فاصله مرکز جرم برای نظارت بر ارتباط جهانی HEG1-KRIT1 و جداسازی رابط بومی محلی در مجتمع apo در مجتمعهای حاوی HKi2، HN1، HN2 یا HN3 مورد استفاده قرار گرفت. برای هر سیستم، خط بالایی کل فاصله زنجیره به زنجیره HEG1–KRIT1 COM را نشان میدهد، در حالی که خط پایین فاصله COM را روی رابط اصلی HEG1–KRIT1 نشان میدهد. تصاویر فوری سطحی نشان دهنده جهت گیری نسبی دو شریک اتصال و موقعیت لیگاند در طول شبیه سازی است. افزایش فاصله COM رابط بومی در سیستمهای محدود به HN نشاندهنده یک بازآرایی متوسط محلی مطابق با اختلال جزئی در منطقه تماس HEG1-KRIT1 است.
HN1-HN3 پایداری ساختاری جهانی HEG1-KRIT1 را حفظ می کند و در عین حال تغییرات ساختاری وابسته به لیگاند را ایجاد می کند.
تجزیه و تحلیل پایداری جهانی MD در شکل 6 و جدول S2 نشان می دهد که تمام سیستم های HEG1-KRIT1 شبیه سازی شده از نظر ساختاری در طول مسیرهای 1000 ns پایدار می مانند، اگرچه اتصال لیگاند منجر به افزایش اندکی در انحراف ساختاری نسبت به کمپلکس apo می شود. سیستم apo HEG1-KRIT1 کمترین RMSD پایه را با مقدار متوسط 0.035±0.231 نانومتر نشان داد که نشاندهنده یک مسیر مرجع پایدار است. سیستمهای متصل به لیگاند مقادیر RMSD کمی بالاتر را نشان دادند و به 0.083 ± 0.288 نانومتر برای HKi2، 0.280 0.044 نانومتر برای HN1، 0.295 ± 0.066 و 0.066 ± nm برای HKi2 افزایش یافتند. نانومتر برای HN3، نشان میدهد که اتصال ترکیبی تحرک ساختاری را افزایش میدهد اما باعث بیثباتی در مقیاس بزرگ نمیشود. شعاع چرخش در همه سیستمها توزیع نزدیکی دارد، از 0.016 ± 2.515 نانومتر برای HKi2 تا 2.533 ± 0.020 نانومتر برای HN2، که از حفظ فشردگی کلی KRIT1 در سراسر شبیهسازیها پشتیبانی میکند. تجزیه و تحلیل RMSF بیشتر پروفیلهای انعطافپذیری باقیمانده مشابهی را در میان کمپلکسهای آپو و لیگاند محدود، با نوسانات موضعی اما بدون بیثباتی گسترده ستون فقرات پروتئین نشان داد. HN2 دارای کمترین میانگین زنجیره A RMSF در بین ترکیبات HN، 0.163 ± 0.100 نانومتر بود، در حالی که HN1 و HN3 به ترتیب در 0.181 ± 0.099 و 0.185 0.10، انعطاف پذیری کمی بالاتر نشان دادند. مقادیر SASA گزارش شده در جدول S2 برای HN1-HN3 بیشتر از سیستم های apo و HKi2 است.سازگار با بازسازی رابط گسترده تر مشاهده شده در سنجش اختلال PPI. با هم، این دادهها نشان میدهند که HN1-HN3 در سطح جهانی آشکار نمیشود یا HEG1-KRIT1 را بیثبات نمیکند، اما در عوض ثبات کلی پیچیده را حفظ میکند و در عین حال تغییرات موضعی در ساختار و دسترسی سطحی را مطابق با بازسازی رابط بومی ارتقا میدهد.

پایداری ساختاری جهانی و انعطافپذیری کمپلکسهای HEG1-KRIT1 وابسته به لیگاند در طول شبیهسازیهای MD 1000 ns. MD وابسته به زمان کمپلکس apo HEG1-KRIT1 و مجتمعهای حاوی HKi2، HN1، HN2، یا HN3 را تجزیه و تحلیل میکند. (الف) Backbone RMSD برای نظارت بر انحراف ساختاری جهانی در طول شبیه سازی استفاده شد. (ب) شعاع چرخش برای ارزیابی فشردگی کلی کمپلکس پروتئین محاسبه شد. (سی) سطح قابل دسترس حلال برای ارزیابی تغییرات در قرار گرفتن در معرض سطح استفاده شد. (آقای) RMSF بر روی باقیمانده ها برای مقایسه الگوهای انعطاف پذیری محلی در سیستم های شبیه سازی شده محاسبه شد.
تجزیه و تحلیل FEL حوضه های ساختاری خاص لیگاند را نشان می دهد که از تعامل پایدار KRIT1 توسط HN1-HN3 پشتیبانی می کند.
تجزیه و تحلیل چشمانداز انرژی آزاد در شکل 7 نشان میدهد که سیستمهای HEG1-KRIT1 متصل به لیگاند از پروفیلهای انرژی ساختاری مختلف در طول شبیهسازیهای MD 1000 ns نمونهبرداری کردند، که نشان میدهد هر ترکیب رفتار ساختاری مجموعه را بهطور متفاوتی تحت تأثیر قرار میدهد. سیستم مرجع HKi2 یک منطقه کم انرژی گسترده با حداقل های مرتبط چندگانه را نشان می دهد که با انعطاف پذیری ساختاری در رابط KRIT1 سازگار است. HN1 یک چشمانداز درازتر در امتداد PC1 و PC2 ایجاد کرد، با یک حوضه کمانرژی تعریفشده جدا از مناطق با انرژی بالاتر، که نشان میدهد اتصال HN1 بهجای نمونهبرداری ساختاری گسترده، به نفع یک زیرمجموعه محدود از ترکیبها است. HN2 سطح کم انرژی گستردهتر و پیوستهتری را نشان میدهد، که نشان میدهد این ترکیب به حالتهای ساختاری محدود اجازه میدهد در حالی که به ناحیه اتصال KRIT1 محدود میماند. در مقابل، HN3 یک حوضه کم انرژی نسبتا فشرده را نشان می دهد، که نشان دهنده یک مجموعه ساختاری محلی تر است. به طور کلی، پروفایلهای FEL نشان میدهند که HN1-HN3 پس از اتصال به KRIT1 یکسان رفتار نمیکنند: به نظر میرسد HN1 و HN3 حالتهای ساختاری تعریفشدهتری را تثبیت میکنند، در حالی که HN2 توزیع ساختاری گستردهتر اما همچنان از نظر انرژی مطلوب را حفظ میکند.
نشاندهنده کمترین ترکیبهای انرژی نشاندادهشده در شکل 8، بیشتر از این نتیجهگیری حمایت میکند که ترکیبات انتخابشده در یا نزدیک منطقه قابل تشخیص HEG1 KRIT1 در حالتهای انرژی مطلوب قرار دارند. در این عکسهای فوری با حداقل انرژی، HN1 در جیب میانی نزدیک باقی ماندههایی که قبلاً در تجزیه و تحلیل اتصال شناسایی شده بودند، موضعی باقی میماند و اشغال پایدار ناحیه اتصال مرتبط با HEG1/HKi2 را حفظ میکند. HN2 و HN3 مکانیسمهای اتصال گستردهتری را نشان میدهند، با جانشینهای بزرگترشان که سطح وسیعتری را اشغال میکنند و باقیماندههای نزدیک و تماسهای در معرض حلال را درگیر میکنند. این رفتار با نشانههای قبلی اختلال MD و PPI مطابقت دارد، که در آن HN2 و HN3 تماسهای لیگاند-پروتئین را حفظ میکنند و در عین حال به جای تجزیه کامل کمپلکس HEG1-KRIT1، بازسازی را ارتقا میدهند. با هم، نقشههای FEL و تصاویر ساختاری با حداقل انرژی نشان میدهند که HN1-HN3 حالتهای ساختاری پایدار متصل به KRIT1 را با تفاوتهای خاص لیگاند در محدودیت ساختاری، پوشش سطح، و پتانسیل بازسازی سطح تشکیل میدهند.

تجزیه و تحلیل چشم انداز انرژی آزاد مجتمع های HEG1-KRIT1 متصل به لیگاند. مناظر انرژی آزاد دوبعدی و سه بعدی از دو جزء اصلی PC1 و PC2 که از مسیرهای MD 1000 ns مجتمعهای HEG1-KRIT1 حاوی HKi2، HN1، HN2 یا HN3 استخراج شدهاند، تولید شدند. گرادیان رنگ، انرژی آزاد نسبی گیبس را نشان میدهد، با مناطق انرژی پایینتر مربوط به حالتهای ساختاری پرجمعیتتر و از نظر انرژی مطلوب. نقشههای FEL الگوهای نمونهبرداری ساختاری لیگاند خاص را نشان میدهند، که نشان میدهد هر ترکیب بر چشمانداز انرژی متفاوتی در مجموعه HEG1-KRIT1 حاکم است.

کمترین ترکیبات انرژی را از تجزیه و تحلیل FEL نشان می دهد. عکسهای فوری ساختاری با کمترین انرژی که از استخرهای انرژی آزاد غالب مجتمعهای HEG1-KRIT1 حاوی HKi2، HN1، HN2، یا HN3 به دست آمدهاند. هر پانل موقعیت لیگاند را در داخل یا نزدیک منطقه قابل تشخیص KRIT1 HEG1 در رندرهای کارتونی و سطحی نشان میدهد، با بقایای متقابل نزدیک برچسبگذاری شده است.
تجزیه و تحلیل انرژی Ligand-KRIT1 HN2 را به عنوان قویترین کاندید برای اتصال KRIT1 شناسایی میکند که عمدتاً توسط تماسهای کوتاه برد واندروالسی هدایت میشود.
تجزیه و تحلیل انرژی برهمکنش لیگاند-پروتئین در شکل 9. جدول 3 نشان می دهد که هر سه نامزد HN انرژی های اتصال مطلوبی را با KRIT1 حفظ می کنند، با انرژی های اتصال کلی به دست آمده توسط MM/PBSA به طور کلی با HKi2 مرجع قابل مقایسه است. HKi2 یک ΔTOTAL برابر با - 18.51 ± 2.37 kcal/mol را نشان داد، در حالی که HN1، HN2 و HN3 مقادیر - 17.31 ± 3.30، 18.96 ± و 2 را نشان دادند. − به ترتیب 16.36 ± 3.71 kcal/mol. در میان ترکیبات آزمایش شده، HN2 دارای مطلوب ترین انرژی اتصال کلی است، کمی بیشتر از HKi2، در حالی که HN3 ضعیف ترین امتیاز اتصال کلی را نشان می دهد. شرایط تجزیه نشان میدهد که اتصال عمدتاً توسط فعل و انفعالات فاز گاز مطلوب، بهویژه مشارکتهای واندروالس پشتیبانی میشود، با HN1-HN3 که مقادیر ΔVDWAALS قویتری نسبت به HKi2 نشان میدهد. HN2 مطلوبترین عبارت ΔVDWAALS را در - 26.61 ± 2.80 کیلوکالری در مول، مطابق با ساختار گستردهتر و درگیری سطح آبگریز گستردهتر آن در جیب KRIT1 داد. سهم الکترواستاتیکی برای همه لیگاندها مطلوب بود، اگرچه HN2 مقدار ΔEEL ضعیفتری نسبت به HKi2، HN1 و HN3 داشت، که نشان میدهد مزیت اتصال آن بیشتر به دلیل مکمل شکل و تماسهای پراکندگی است تا الکترواستاتیک. همانطور که برای محاسبات انرژی آزاد نقطه پایانی انتظار می رفت، فعل و انفعالات فاز گاز مطلوب تا حدی با جریمه های حلالیت قطبی مثبت جبران شد، اما مقادیر ΔTOTAL نقطه پایانی برای همه ترکیبات منفی باقی ماند و اتصال KRIT1 پایدار را حفظ کرد.
پروفایل های تعامل کوتاه برد بیشتر از این رتبه بندی پشتیبانی می کنند. ردیابیهای LJ-SR در شکل 9B و مقادیر جدول 3 نشان میدهند که HN2 دارای قویترین انرژی برهمکنش لنارد-جونز با برد کوتاه است، 123.18 ± 29.61 کیلوژول بر مول، و به دنبال HN1 در 95.90 ± kJ/mol، 95.90≀ ± kJ/mol است. − 90.03 ± 30.61 kJ/mol و HKi2 در 64.49 ± 26.80 kJ/mol. فعل و انفعالات کوتاه برد کولن نیز در سری لیگاند مطلوب بود، با HN2 دوباره قوی ترین مقدار متوسط Coul-SR، - 33.01 ± 19.43 kJ/mol را نشان داد. نمودار تجزیه انرژی باقیمانده در شکل. 9C-F نشان می دهد که اتصال لیگاند تحت سلطه یک باقیمانده نیست، بلکه در چندین تماس در سطح باقیمانده مطلوب در داخل و اطراف منطقه شناسایی KRIT1 HEG1 توزیع می شود. این الگوی برهمکنش توزیعشده با تحلیلهای docking، تماس MD و FEL سازگار است، که نشان میدهد ترکیبات HN در رابط KRIT1 درگیر باقی میمانند در حالی که بازسازی سطحی محلی را ارتقا میدهند. به طور کلی، این نتایج HN2 را بهعنوان مطلوبترین بایندر KRIT1 از نظر انرژی با انرژی کل اتصال و نیروی تماس کوتاهبرد شناسایی میکنند، در حالی که HN1 قابل توجه است زیرا انرژی PPI و تجزیه و تحلیلهای رابط بومی قبلی تأثیر مخرب قویتری را بر سازماندهی تماس HEG1-KRIT1 نشان میدهد.

پروفیل های تعامل-انرژی لیگاند-KRIT1 و تجزیه انرژی باقیمانده انرژیهای تعامل کوتاه برد حلشده با زمان و سهم انرژی در سطح باقیمانده برای HKi2، HN1، HN2، و HN3 در طول شبیهسازیهای MD به KRIT1 متصل میشوند. (الفانرژیهای برهمکنش کولن برد کوتاه نشاندهنده مشارکت الکترواستاتیکی در اتصال لیگاند-پروتئین است. (بانرژیهای برهمکنش کوتاه برد لنارد-جونز مشارکتهای غیرقطبی و تماسی واندروالس را نشان میدهند. (C–Fنقشههای تجزیه انرژی باقیمانده، بقایای KRIT1 را شناسایی میکنند که به ترتیب در اتصال لیگاند برای HKi2، HN1، HN2، و HN3 به طور مطلوب یا نامطلوب نقش دارند. مقادیر منفی بیشتر نشان دهنده سهم انرژی مطلوب تر است.
پروفایل ADMET از HN1-HN3 به عنوان نتایج غربالگری مانند دارو پشتیبانی می کند، اما غیرفعال هایی را که نیاز به بهینه سازی دارند شناسایی می کند.
پروفایلهای ADMET در سیلیکون در جدول S3 نشان میدهد که HN1، HN2، و HN3 دارای خواص فیزیکی و شیمیایی و دارو مانند هستند، اما هر ترکیب دارای تعهدات توسعه پیشبینیشدهای است که باید قبل از پیشرفت بیشتر مورد توجه قرار گیرد. هر سه کاندید اختلال لیپینسکی صفر، مقادیر QED مطلوب از 0.707 تا 0.729 و نمرات دسترسی مصنوعی پایین را نشان دادند که از مناسب بودن آنها به عنوان مواد شیمیایی قابل درمان در مراحل اولیه پشتیبانی می کند. HN1 کوچکترین و کم انعطاف پذیرترین ترکیب با وزن مولکولی 206.01 گرم بر مول، TPSA 37.30 Ų، یک پیوند قابل چرخش و logP 3.793 بود، در حالی که HN2 و HN3 بزرگتر و قطبی تر بودند، با وزن مولکولی 380.12 g/mol و 90.12 g/m و TPSA. 60.85 و 66.84. Ų به ترتیب. پیشبینیهای جذب و توزیع نشان میدهند که نتایج جذب رودهای محدود برای هر سه ترکیب، اتصال بالا به پروتئین پلاسما و نفوذپذیری متغیر BBB، با HN2 بالاترین نفوذپذیری پیشبینیشده BBB را نشان میدهد. پیشبینیهای متابولیسم HN1 را بهعنوان یک مهارکننده احتمالی CYP1A2 شناسایی کردند، در حالی که HN2 و HN3 مهار CYP پیشبینیشده کمتری را در اکثر ایزوفرمها نشان دادند. با این حال، نتایج سمیت نگرانیهای مهمی را ایجاد میکند: HN2 و HN3 خطر پیشبینیشده بالایی را برای جهشزایی، سرطانزایی، DILI، سمیت کلیوی و سمیت عصبی Ames نشان میدهند، در حالی که HN1 امتیاز ترکیب واکنشی قوی و خطر بالای حساسیت پوستی را نشان میدهد. این یافتهها نشان میدهند که اگرچه HN1-HN3 کاندیدهای آزمایششده محاسباتی و تجربی برای مطالعات اختلال HEG1-KRIT1 هستند، آنها باید بهجای نتایج بهینهشده، ترکیبهای موفق اولیه در نظر گرفته شوند. به طور کلی، HN1 از نظر سادگی مولکولی و رفتار اختلال PPI مطلوب تر به نظر می رسد، اما ممکن است نیاز به اصلاح ساختاری داشته باشد.برای کاهش واکنش پذیری، در حالی که HN2 و HN3 ممکن است به بهینه سازی برای کاهش سمیت پیش بینی شده و بهبود خواص مرتبط با جذب نیاز داشته باشند.
HN1 با اختلال HKi2 در شرایط آزمایشگاهی در تعامل HEG1-KRIT1 قابل مقایسه است.
سنجش رقابت فلوسیتومتری مبتنی بر مهره در شکل 10 تأیید کرد که هر سه کاندید انتخاب شده 2-هیدروکسی-1-نفتالدئید اتصال EGFP-KRIT1 FERM به مهره های پوشش داده شده با HEG1 را به روشی وابسته به غلظت مهار کردند، و اعتبار غربالگری محاسباتی جریان کار H1EGRIKT را با اختلال در جریان کار آزمایشی-KRIK تأیید کرد. مهارکننده کنترل مثبت HKi2 یک IC50 برابر با 0.13 ± 90/3 میکرومولار تولید کرد که با عملکرد قوی سنجش مطابقت دارد و معیاری برای مقایسه فراهم میکند. قابل توجه، HN1 IC50 کمتری نسبت به HKi2 نشان داد، با IC50 ± 0.14 میکرومولار 3.51، که HN1 را به عنوان فعال ترین ترکیب در این سری شناسایی می کند. این نتیجه با تجزیه و تحلیل محاسباتی اختلال PPI سازگار است، جایی که HN1 تنها نامزد مرتبط با ΔΔG مثبت است.PPI و اختلال واضحی در رابط HEG1-KRIT1 بومی نشان داد. در مقابل، HN2 و HN3 اتصال را با شدت کمتری مهار کردند، با مقادیر IC50 به ترتیب 24.12 1.59 و 31.63 ± 1.99 میکرومولار، علیرغم نمایه های اتصال KRIT1 و تماس با لیگاند در شبیه سازی MD. این تفاوت نشان می دهد که اتصال پایدار KRIT1 به تنهایی برای ناک دان رقابتی کارآمد کافی نیست. در عوض، جهت گیری لیگاند، اشغال سطح تشخیص HEG1 بومی، و توانایی تضعیف تماس های مولد HEG1-KRIT1 به نظر می رسد عوامل مهم تری برای مهار عملکردی باشند. به طور کلی، دادههای آزمایشگاهی HN1 را بهعنوان قویترین مختلکننده آزمایشی HEG1-KRIT1 در میان نامزدهای آزمایششده شناسایی کرد و از اولویتبندی آن به عنوان داربست سرب برای بهینهسازی بیشتر پشتیبانی کرد.

مهار در شرایط آزمایشگاهی تعامل HEG1-KRIT1 توسط HN1-HN3. منحنیهای دوز-پاسخ از یک روش فلوسیتومتری مبتنی بر مهره رقابتی که مهار اتصال KRIT1 FERM به دانههای پوششدادهشده با HEG1 توسط HKi2 و کاندیداهای انتخابی ۲-هیدروکسی-۱-نفتالدئید را اندازهگیری میکند. (الف) HKi2 به عنوان یک مهارکننده کنترل مثبت گنجانده شد. (B-D) HN1، HN2، و HN3 کاهش های وابسته به غلظت را در اتصال KRIT1 FERM به دانه های پوشش داده شده با HEG1 ایجاد کردند. هر غلظت در سه تکرار فنی در هر یک از سه آزمایش مستقل ارزیابی شد. نقاط داده نشان دهنده میانگین هندسی شدت فلورسانس ± SD هستند و با استفاده از یک مدل لجستیک چهار پارامتری با شیب متغیر برازش شدند. مقادیر IC50 بهدستآمده بهعنوان تخمینهای توصیفی از اثربخشی ارائه میشوند. هیچ آزمون آماری رسمی از برتری یا هم ارزی بین ترکیبات انجام نشد. بنابراین، تفاوت های عددی بین مقادیر IC50 باید به صورت توصیفی تفسیر شود.
مطالعات قبلی هدایتشده با ساختار، HKi1 را بهعنوان یک مهارکننده HEG1-KRIT1 با میکرومولار پایین (IC50 تقریباً 10 میکرومولار) شناسایی کردند، در حالی که مشتقات کوچکتر آن HKi2 و HKi3 قدرت بهبود یافته را در حدود 3.5 میکرومولار نشان دادند. متعاقبا، HKi6 بهینه سازی شده نیز میل بهبود یافته ای را برای KRIT1 نشان داد و از جذب KRIT1 به HEG1 در یک سنجش کولوکالیزاسیون سلولی جلوگیری کرد.7. اخیراً، 2-هیدروکسی-1-نفتالدئید به عنوان یک لیگاند کووالانسی انتخابی و برگشت پذیر KRIT1 Lys720 با زمان ماند طولانی مشخص شد و آنالوگ های HNA جایگزین درگیری هدف و فعالیت سلولی بهبود یافته را نشان دادند.11. در این زمینه، IC50 مشاهده شده HN1 (14/0 ± 51/3 میکرومولار) در محدوده میکرومولاری پایین گزارش شده برای مهارکنندههای HKi است. با این وجود، تفاوتها در طراحی سنجش و فقدان مطالعات هدف مستقیم و سلولی برای HN1 مانع از ادعای برتری یا همارزی میشود. بنابراین، HN1 باید به عنوان یک آنالوگ اولیه برای اعتبار سنجی بیشتر در نظر گرفته شود.